Artículo de divulgación científica
Dos mundos un mismo escarabajo
Universidad Distrital Francisco José de Caldas

DOI: https://doi.org/10.47633/oriolus1.2-26
Cómo citar
Resumen
Los girínidos, o escarabajos giradores, son insectos acuáticos que viven justo en la frontera entre el agua y el aire. Para resolver el reto óptico de vigilar dos medios a la vez, desarrollaron un ojo compuesto dividido en una mitad superior y una mitad inferior, cada una especializada según el ambiente que observa. El ojo inferior tiene más unidades visuales y se asocia con la caza bajo el agua, mientras que el superior posee un recubrimiento corneal antirreflejante y se vincula con la orientación en la superficie. Esta división se extiende hasta el cerebro, con regiones visuales prácticamente independientes para cada mitad. El artículo explora esta solución evolutiva y su paralelo con el pez Anableps anableps, además de su potencial como inspiración para sensores ópticos biomiméticos.
Palabras clave
Coleoptera, Ojo compuesto, Evolución, Limnología, Visión animal
¿Escarabajos acuáticos?
Los girínidos, conocidos comúnmente como escarabajos giradores, a primera vista parecen puntos negros que bailan en círculos sobre la superficie de charcos y estanques, como se puede apreciar en la Figura 1. Esta familia de escarabajos acuáticos, con aproximadamente 700 especies repartidas en 15 géneros (Gustafson & Miller, 2015), presenta una marcada adaptación a la vida en la interfase entre el agua y el aire; los adultos pasan la mayor parte de su tiempo sobre la superficie de cuerpos de agua, pero son también buenos voladores y sus larvas tienen hábitos distintos: viven sumergidas y se alimentan en el fondo de los cuerpos de agua donde nacen (Beutel & Roughley, 2016). Pertenecen al suborden Adephaga, el mismo que agrupa a los escarabajos terrestres depredadores, aunque los girínidos son los únicos que adoptaron como nicho permanente precisamente esa frontera entre dos mundos.
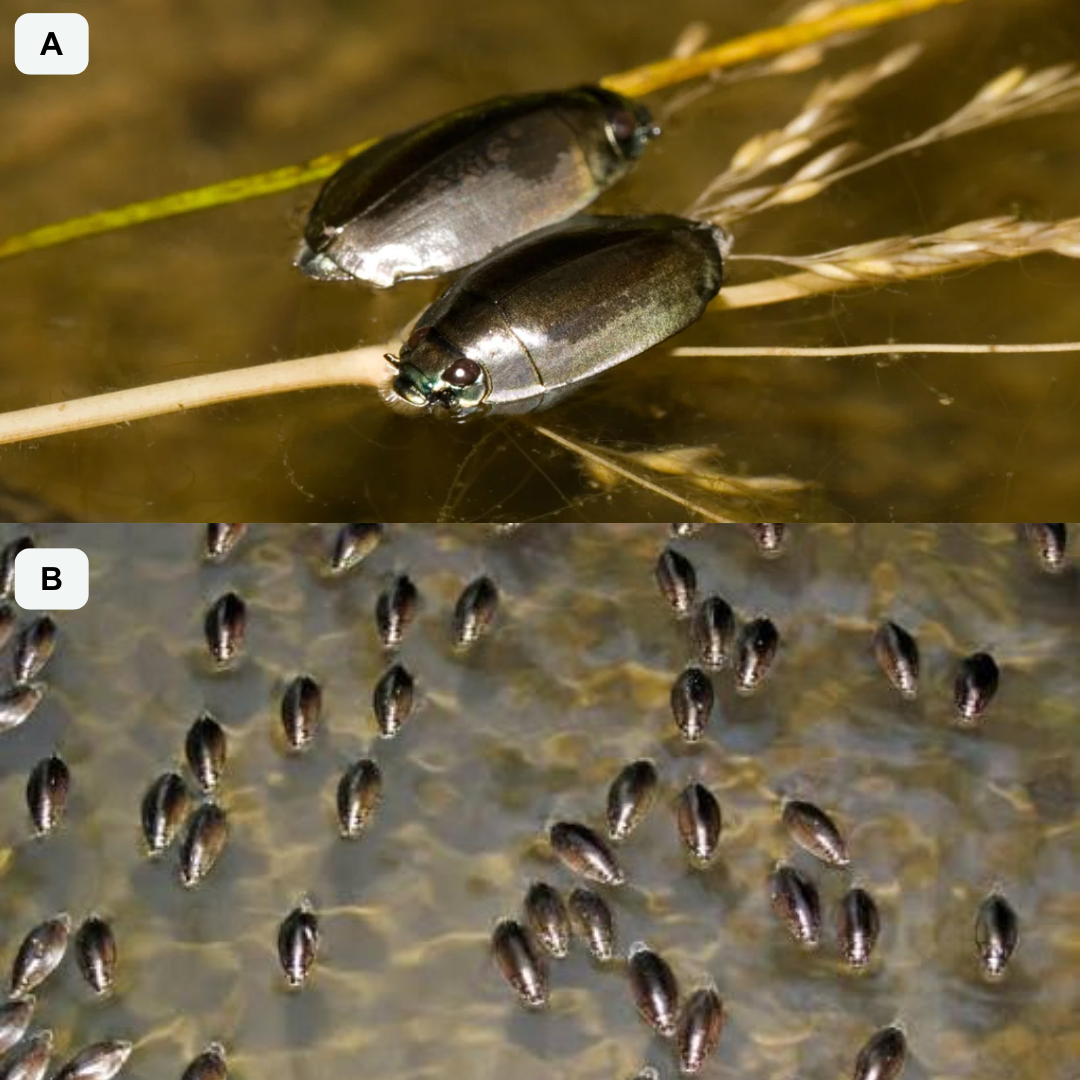
Durante el día suelen agruparse en densas "balsas" de cientos o miles de individuos. Se ha propuesto que estas agregaciones pueden contribuir a la detección temprana de depredadores, aunque probablemente también cumplan otras funciones ecológicas y conductuales aún no del todo comprendidas (Heinrich & Vogt, 1980). Si algo los amenaza de cerca, además de huir nadando en círculos erráticos, algunas especies como Dineutes hornii pueden liberar secreciones químicas desde glándulas abdominales que disuaden a sus depredadores (Eisner & Aneshansley, 2000). Pero ni la velocidad ni la química explican del todo cómo prosperan en ese ambiente tan exigente, ahí, en esa línea delgada donde un mundo termina y otro comienza. Su cuerpo desarrolló una de las soluciones ópticas más singulares del reino animal: un ojo compuesto dividido en dos regiones especializadas.
El problema de ver debajo del agua y sobre ella al mismo tiempo
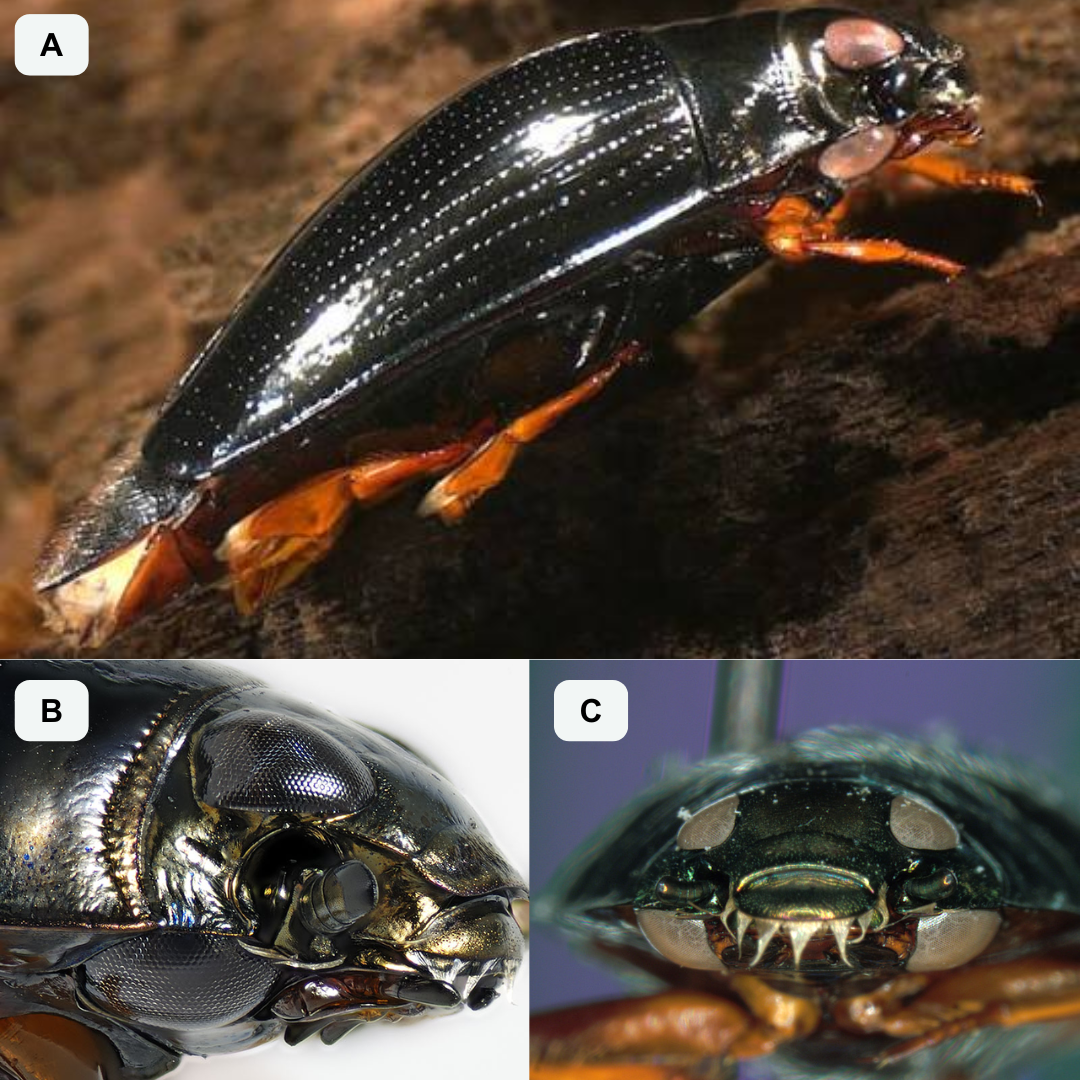
Antes de entender qué hace único a este ojo, conviene explicar cómo funciona. Como en todos los insectos, el ojo de un girínido está formado por unidades llamadas omatidios, que en términos generales serán los "ladrillos" del ojo compuesto, cada uno con su propio lente y células sensibles a la luz. Pero, en estos escarabajos, ese conjunto de omatidios no forma una superficie continua, se divide en una región dorsal, que queda por encima del nivel del agua cuando el animal flota, y una región ventral, que queda sumergida. Podría decirse que cada escarabajo "ve con cuatro ojos", un par orientado hacia el cielo y un par hacia el fondo del agua, aunque anatómicamente se trata de un solo par de ojos compuestos con dos regiones diferenciadas en cada uno.
¿Por qué tomarse tantas molestias evolutivas? La respuesta tiene que ver con la física de la luz. Cuando un rayo de luz pasa del aire al agua, cambia de dirección porque ambos medios tienen un índice de refracción diferente, este principio se conoce como la ley de Snell. Esto significa que lo que funciona como lente óptimo en el aire no necesariamente funciona bajo el agua, y viceversa. Para un depredador que necesita vigilar lo que cae del cielo y lo que se mueve en el fondo, esto plantea un reto de ingeniería biológica para nada despreciable.
La solución de los girínidos fue, literalmente, dividir el problema. Estudios con microscopía electrónica y tomografía computarizada revelaron que la región dorsal del ojo está formada, en promedio, por unos 1913 omatidios, mientras que la región ventral alcanza cerca de 3099 (Muinde et al., 2024). Esa mayor cantidad de unidades visuales en la parte sumergida le da al escarabajo un campo de visión más amplio bajo el agua. Tiene sentido, pues en ese medio, donde depredadores y presas se mueven en todas direcciones, conviene abarcar más ángulo visual, aunque sea con un poco menos de detalle.
Un ojo hecho a la medida
La división no se queda en el tamaño. Investigaciones con microscopía de fuerza atómica mostraron que la córnea de los omatidios dorsales está cubierta por nanoestructuras con forma de laberinto, mientras que la superficie de los omatidios ventrales es completamente lisa (Blagodatski et al., 2014). Estas nanoestructuras corneales cumplen funciones ópticas distintas en cada región, es decir, actúan como recubrimiento antirreflectante, justo en el rango donde el resplandor solar sobre la superficie del agua es más intenso. Lo podemos ver como un filtro antideslumbrante integrado directamente en la superficie del ojo, aunque en sentido estricto se trata de una propiedad óptica antirreflectante derivada de su arquitectura a escala nanométrica. Este tipo de textura se conoce en otros insectos desde hace décadas, como, por ejemplo, en las polillas nocturnas, donde recibe el nombre de "efecto ojo de polilla" (Stavenga et al., 2006). Lo notable en los girínidos es que solo aparece en la región dorsal, la que mira al aire, mientras que la región ventral, en contacto con el agua, conserva una superficie lisa. Cabe destacar que la comparación con las polillas es válida en cuanto a la función óptica antirreflectante, aunque la arquitectura exacta de las nanoestructuras no es idéntica en ambos grupos.
El cerebro detrás de la visión
Lo más sorprendente es que esta división no termina en el ojo, continúa hacia el sistema nervioso. Los lóbulos ópticos, es decir, las regiones del cerebro que procesan la información visual, están organizados en dos mitades casi independientes, cada una con sus propios neuropilos (zonas de procesamiento visual), correspondiendo una a la región dorsal y otra a la región ventral del ojo (Lin & Strausfeld, 2013). Dicho de otro modo, el escarabajo no solo capta dos imágenes distintas; las procesa por vías nerviosas prácticamente separadas. Como punto de comparación, podría imaginarse como si llevara dos sistemas de visión funcionando en paralelo dentro de una sola cabeza.
Esta especialización tiene, además, un propósito conductual concreto, al menos en las especies estudiadas hasta el momento. Se conoce que en algunas especies la información visual procedente de la región dorsal se ha relacionado con procesos de orientación espacial y reconocimiento del entorno sobre la superficie, mientras que la región ventral parece más implicada en la detección de presas bajo el agua (Muinde et al., 2024). A esto se suma que se observaron diferencias en la expresión de la opsina LW (una proteína sensible a la luz verde) entre ambas regiones del ojo, la región dorsal mostró patrones similares a los ojos de insectos diurnos, mientras que la región ventral presentó una expresión más ampliada de esta opsina, parecida a la de insectos adaptados a condiciones de menor luminosidad (Salamanca & Brown, 2018). Es importante señalar que estos resultados corresponden a especies particulares y que la extensión de estos patrones al conjunto de la familia Gyrinidae todavía requiere investigación comparativa.
No es el único con esta idea
Los girínidos no llegaron solos a esta solución. El pez de cuatro ojos, Anableps anableps, que también vive justo en la superficie del agua, desarrolló de forma independiente un ojo dividido en una región superior y una inferior, cada una con propiedades ópticas adaptadas a su medio (Sivak, 1976). Que un insecto y un pez, dos linajes separados por cientos de millones de años de evolución y con planes corporales completamente distintos, hayan llegado a diseños tan parecidos frente al mismo problema (vivir exactamente en el límite entre el agua y el aire) es un ejemplo de convergencia evolutiva funcional, que ocurre cuando presiones selectivas similares empujan a organismos muy diferentes hacia soluciones comparables, construidas con materiales biológicos totalmente distintos y sin ningún ancestro común que las explique.
Lo que todavía no sabemos
A pesar de los avances recientes en microscopía y neurobiología, persisten preguntas abiertas. No está del todo claro cómo el cerebro del escarabajo integra (o mantiene deliberadamente separadas) las dos imágenes que recibe en cada instante, ni cómo cambia su comportamiento visual entre el día y la noche, cuando las condiciones de luz sobre y bajo el agua varían de forma muy diferente. Tampoco se sabe con precisión qué tan generalizable es este patrón dentro de las aproximadamente 700 especies de la familia, ya que los estudios más detallados sobre anatomía ocular, neurobiología y expresión de opsinas se concentran en un número reducido de especies y géneros. La extensión de estos resultados al resto de girínidos sigue siendo una pregunta abierta que requiere mayor investigación comparativa.
Ingeniería inspirada en sus ojos
Estas preguntas no son solo curiosidad académica. Las propiedades antirreflectantes de las nanoestructuras corneales de los girínidos representan un principio biomimético de interés, la posibilidad de ajustar las propiedades ópticas de una superficie según el ambiente en que opera, sin necesidad de lentes móviles ni mecanismos complejos. De forma más general, los ojos compuestos de los insectos ya han inspirado el diseño de cámaras y sensores de visión artificial con campos visuales muy amplios, útiles para drones y sistemas de navegación autónoma (Floreano et al., 2013). Un sensor que deba operar alternando entre dos medios, por ejemplo, monitoreando simultáneamente la superficie y el fondo de un cuerpo de agua, podría beneficiarse en el futuro de principios similares a los observados en los girínidos. Estas son, por ahora, aplicaciones potenciales basadas en principios demostrados, no tecnologías consolidadas.
Conclusión
La próxima vez que veas un pequeño escarabajo girando en círculos sobre un estanque, vale la pena recordar que ese insecto está, en ese mismo instante, observando dos mundos a la vez: el cielo y el fondo del agua, con dos regiones oculares que evolucionaron para hacer exactamente eso. Los girínidos nos recuerdan que la evolución no siempre necesita inventar órganos nuevos para lograr soluciones extraordinarias: a veces basta con dividir lo que ya existe y especializar cada mitad para el mundo que le toca mirar. Comprender cómo un solo organismo resolvió dos problemas ópticos opuestos en una misma estructura sigue siendo una fuente activa de preguntas, tanto para la biología evolutiva como para quienes buscan en la naturaleza inspiración para la óptica e ingeniería del futuro.
Referencias
Beutel, R. G., & Roughley, R. E. (2016). Gyrinidae Latreille, 1810. En R. G. Beutel & R. A. B. Leschen (Eds.), Handbook of Zoology: Coleoptera, Beetles. Vol. 1: Morphology and Systematics (2.ª ed., pp. 92–103). De Gruyter.
Blagodatski, A., Kryuchkov, M., Sergeev, A., Klimov, A. A., Shcherbakov, M. R., Enin, G. A., & Katanaev, V. L. (2014). Under- and over-water halves of Gyrinidae beetle eyes harbor different corneal nanocoatings providing adaptation to the water and air environments. Scientific Reports, 4, 6004. https://doi.org/10.1038/srep06004
Eisner, T., & Aneshansley, D. J. (2000). Chemical defense: Aquatic beetle (Dineutes hornii) vs. fish (Micropterus salmoides). Proceedings of the National Academy of Sciences, 97(21), 11313–11318. https://doi.org/10.1073/pnas.190335397
Floreano, D., Pericet-Camara, R., Viollet, S., Ruffier, F., Brückner, A., Leitel, R., Buss, W., Menouni, M., Expert, F., Juston, R., Dobrzynski, M. K., L'Eplattenier, G., Recktenwald, F., Mallot, H. A., & Franceschini, N. (2013). Miniature curved artificial compound eyes. Proceedings of the National Academy of Sciences, 110(23), 9267–9272. https://doi.org/10.1073/pnas.1219068110
Gustafson, G. T., & Miller, K. B. (2015). The New World whirligig beetles of the genus Dineutus Macleay, 1825 (Coleoptera, Gyrinidae, Gyrininae, Dineutini). ZooKeys, 476, 1–135. https://doi.org/10.3897/zookeys.476.8630
Heinrich, B., & Vogt, F. D. (1980). Aggregation and foraging behavior of whirligig beetles (Gyrinidae). Behavioral Ecology and Sociobiology, 7(3), 179–186. https://doi.org/10.1007/BF00299362
Lin, C., & Strausfeld, N. J. (2013). A precocious adult visual center in the larva defines the unique optic lobe of the split-eyed whirligig beetle Dineutus sublineatus. Frontiers in Zoology, 10, 7. https://doi.org/10.1186/1742-9994-10-7
Moore, S. (s.f.). Gyrinus. Adult eyes divided into upper and lower halves [Fotografía]. Manaaki Whenua – Landcare Research. https://www.landcareresearch.co.nz/tools-and-resources/identification/freshwater-invertebrates-guide/identification-guide-what-freshwater-invertebrate-is-this/jointed-legs/insects-and-springtails/adult-beetles/whirlygig-beetle-gyrinus
Muinde, J., Zhang, T.-H., Liang, Z.-L., Liu, S.-P., Kioko, E., Huang, Z.-Z., & Ge, S.-Q. (2024). Functional anatomy of split compound eyes of the whirligig beetles Dineutus mellyi (Coleoptera: Gyrinidae). Insects, 15(2), 122. https://doi.org/10.3390/insects15020122
Salamanca, D. A., & Brown, F. (2018). Sub-functionalization of dorsal and ventral eyes in a whirligig beetle (Coleoptera: Gyrinidae). Neotropical Biodiversity, 4(1), 138–146. https://doi.org/10.1080/23766808.2018.1510567
Sivak, J. G. (1976). Optics of the eye of the "four-eyed fish" (Anableps anableps). Vision Research, 16(5), 531–534. https://doi.org/10.1016/0042-6989(76)90035-3
Stavenga, D. G., Foletti, S., Palasantzas, G., & Arikawa, K. (2006). Light on the moth-eye corneal nipple array of butterflies. Proceedings of the Royal Society B, 273(1587), 661–667. https://doi.org/10.1098/rspb.2005.3369
St. John, J. (2016). Whirligig beetles (Gyrinidae) (Jonathan Run, near Fultonham, Ohio, USA) [Fotografía]. Wikimedia Commons. https://commons.wikimedia.org/wiki/File:Whirligig_beetles_(Gyrinidae)_(Jonathan_Run,_near_Fultonham,_Ohio,_USA)_(28306608130).jpg

Sugiura, S., & Hayashi, M. (2024). Defenses of whirligig beetles against native and invasive frogs. PeerJ, 12, e17214. https://doi.org/10.7717/peerj.17214